盐类对蛋白质的溶解性和稳定性具有重要影响。通常,蛋白溶解度随着离子强度的增大呈先升高(盐溶效应)后下降(盐析效应)的趋势。此外,相同离子强度下,不同的阳离子或阴离子对于蛋白溶解性和稳定性的影响也有区别(Hofmeister效应)。肌原纤维蛋白(myofibrillar protein,MP)占肌肉总蛋白的55%~60%,同时也是肌肉中主要的骨架蛋白,常被用作模型体系探究贮藏、加工条件对肉品品质的影响 机制[1-2]。肌肉中MP为盐溶性蛋白,其溶解和分散往往需要较高的盐浓度(≥0.6 mol/L)。Munasinghe等[3]发现,KCl、NaCl、LiCl对鱼肉蛋白的提取率均随着盐浓度的增大而显著提高,当盐浓度达0.8 mol/L时,提取率趋于稳定。Kelleher等[4]比较KCl、NaCl、LiCl对鱼肉蛋白提取率及蛋白理化性质的影响,结果显示,LiCl对鱼肉蛋白的提取率更高,可能与其对MP的稳定作用有关;而KCl和NaCl提取条件下MP变性程度较高。盐类对MP的影响也受到其他因素的调控,Wu Lijun等[5]发现,pH值在高于和低于MP等电点的2 种情况下,盐离子对MP溶解性的影响呈相反趋势。Bertram等[6]也指出,不同pH值及离子强度显著影响MP氧化和持水性能。
冷冻是肉类食材或肌肉生物样本常用的保存方法。然而,肉品中MP稳定性较低,其所处环境的扰动可能造成蛋白质变性[7]。目前有关MP冷冻变性已有广泛的研究[8-10],而冷冻诱导蛋白质变性的机制主要包括温度下降、溶质浓缩、pH值变化、冰-水界面形成等[11]。这些因素可能会通过共同作用扰乱蛋白质的稳定性,导致蛋白质解折叠,进一步发生聚集、沉淀等。在冻结的原料肉中,溶质浓缩导致盐和氢离子浓度升高,形成低pH值、高盐环境。Zhang Yuemei等[12]将新鲜猪肉糜暴露于高盐(2 mol/L KCl)或高盐和低pH值的环境中,结果显示,高盐环境提高了肌原纤维的持水性;而低pH值和高盐环境的组合则降低了肌原纤维的持水性,并提高了MP的表面疏水性。这些结果表明,冷冻原料肉中MP的变性受到pH值和盐浓度的共同作用。
原料肉中存在不同的阳离子,主要包括Na+、K+、Mg+和Ca2+等;而在肉品科学研究中,往往也会利用不同种类的盐提取、保存蛋白质。在以往研究中,Li+展现出与Na+和K+不同的特性。根据Hofmeister序列,一价阳离子按其稳定蛋白质的能力可大致排序为Li+>Na+> K+,本研究将Li+作为具有较强稳定作用的代表性阳离子纳入研究,与肉中常见的Na+和K+形成对比,全面揭示不同阳离子对MP冷冻稳定性的影响机制。因此,本研究选取草鱼肉提取MP,探究不同阳离子(Na+、K+、 Li+)及不同pH值条件下MP的冷冻稳定性,以期丰富现有的肌肉蛋白冷冻变性理论,为肌肉源食物的贮藏、加工提供理论参考。
1 材料与方法
1.1 材料与试剂
新鲜草鱼购于江苏省镇江市京口区水产市场;NaCl、KCl、LiCl、盐酸、乙二胺四乙酸(ethylenediaminetetraacetic acid,EDTA)、2,4-二硝基苯肼(2,4-dinitrophenylhydrazine,DNPH)、三氯乙酸、溴酚蓝 国药集团化学试剂有限公司;甘氨酸、Tris、盐酸胍、5,5’-二硫代双(2-硝基苯甲酸)(5,5’-dithiobis (2-nitrobenzoic acid),DTNB)、乙酸乙酯 上海麦克林生化科技有限公司;以上试剂均为分析纯。
1.2 仪器与设备
UW220D电子天平 岛津仪器(苏州)有限公司;T10分散仪器 德国IKA公司;HH-6数显恒温水浴锅 金坛市金分仪器有限责任公司;FE28酸度计瑞士Mettler Toledo公司;F-7100 FL分光光度计 日本日立高新技术公司;H1850R台式高速冷冻离心机湖南湘仪实验室仪器开发有限公司;Mastersizer MS3000激光粒度分析仪 英国马尔文仪器有限公司;F98荧光分光光度计 上海棱光技术有限公司;Nicolet is50傅里叶变换红外光谱仪(配备衰减全反射(attenuated total reflectance,ATR)附件) 美国热电检测分析技术有限公司。
1.3 方法
1.3.1 MP溶液的制备
根据Wang Haifeng等[13]的方法并稍作修改。称取3 份新鲜鱼肉,1 份与4 倍体积的含0.05 mol/L NaCl、20 mmol/L Tris-HCl的低盐预冷缓冲液(pH 7.0)混合,其余2 份分别用4 倍体积的含0.05 mol/L KCl、0.05 mol/L LiCl的低盐缓冲液处理。将3 份样品在冰浴条件下,使用均质机8 000 r/min匀浆1 min,每均质30 s,停止30 s,然后4 ℃、10 000×g离心15 min,得到沉淀。重复上述步骤2 次,以更好地消除肉中的水溶性蛋白质。随后在沉淀中分别加入4 倍体积含对应阳离子的高盐预冷缓冲液(0.6 mol/L阳离子、20 mmol/L Tris-HCl),分别调整含不同阳离子样品的pH值为7.0、6.0、5.0,4 ℃、10 000×g离心15 min后,所得上清液即为MP溶液。
1.3.2 MP溶液的冷冻
使用上述含不同阳离子、具有不同pH值的缓冲液,将MP溶液的蛋白质量浓度调整为10 g/L,新鲜样品立即测定,随后将所有MP溶液-18 ℃冷冻48 h,样品在4 ℃解冻后用于后续测定,所有样品重复测定3 次,设置2 个平行,并对MP溶液冻藏前后的外观进行拍照记录。
1.3.3 MP溶解度测定
参考Yongsawatdigul等[14]的方法并进行一些修改。首先,用20 mmol/L Tris-HCl缓冲液(pH 7.0、0.6 mol/L NaCl)将MP溶液调整至质量浓度为5 mg/mL(ρ1),取3 mL MP溶液,6 000×g离心10 min,随后使用双缩脲法测定上清液中的蛋白质量浓度(ρ2/(mg/mL))。MP溶解度按式(1)计算:
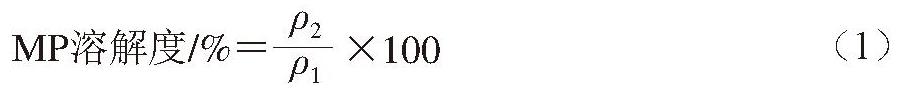
1.3.4 MP表面疏水性测定
根据Chelh等[15]所述方法并稍作修改。将MP溶液调整至质量浓度为4 mg/mL。随后,将200 μL 1 mg/mL溴酚蓝溶液添加到1 mL MP溶液中,涡旋振荡3 min以充分混合,对照组以等体积缓冲液替代MP样品。将所有样品在室温下避光振荡30 min,随后8 000×g离心10 min,将上清液稀释10 倍后,于595 nm波长处测定其吸光度。MP表面疏水性以溴酚蓝结合量表示,按式(2)计算:
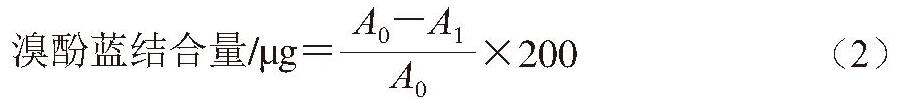
式中:A0为对照组吸光度;A1为实验组吸光度。
1.3.5 MP粒径与Zeta电位测定
参考Feng Jing等[16]的方法并稍作修改,测定MP的粒径。将MP溶液调整至质量浓度为0.1 mg/mL,使用激光粒度分析仪进行测定,MP溶液的粒径以平均直径表征,测试参数:平衡时间60 s,测试温度25 ℃,折光率1.46。
根据Yang Bing等[17]的方法并稍作修改,测定MP的Zeta电位。将MP溶液(0.1 mg/mL)缓慢注入电位皿,确保不产生气泡,溶液在25 ℃平衡60 s后进行测定。
1.3.6 MP傅里叶变换红外光谱测定
参考Yin Tao等[18]的方法并稍作修改。将冷冻的MP溶液冷冻干燥48 h后研磨成粉末状颗粒,采用傅里叶变换红外光谱仪进行测定,扫描次数32,分辨率4 cm-1,扫描范围400~4 000 cm-1,使用Omnic软件进行基线校正处理。背景吸收通过减去空ATR晶体光谱进行校正。通过拟合酰胺I带(1 600~1 700 cm-1)得到蛋白质二级结构相对含量。
1.3.7 MP紫外吸收光谱测定
参考Cong Haihua等[19]的方法并稍作修改。在室温条件下,将MP溶液(0.5 mg/mL)置于1 cm石英比色皿中,使用分光光度计获得230~350 nm波长范围的紫外吸收光谱。
1.3.8 MP内源荧光光谱测定
参考Jiang Wenxin等[20]的方法并稍作修改。将0.5 mg/mL的MP溶液在荧光分光光度计中进行扫描,具体参数:激发波长283 nm,发射波长295~400 nm,激发和发射狭缝宽度均为10 nm,扫描速率1 000 nm/min。
1.3.9 MP总巯基含量测定
参考虎瑶等[21]的方法并稍作修改。将1 mL 5 mg/mL MP溶液与5 mL含90 mmol/L甘氨酸、5 mmol/L EDTA、8 mol/L尿素的Tris-Gly尿素缓冲液(86 mmol/L,pH 8.0)混合,再加入40 μL 4 mg/mL DTNB溶液,充分振荡,室温下反应30 min,于412 nm波长处测定其吸光度(A412 nm)。总巯基含量按式(3)计算:
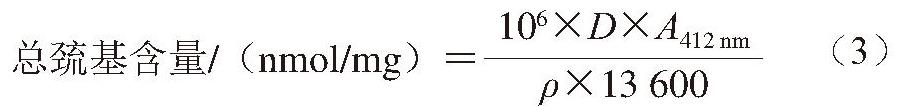
式中:D为稀释倍数,本研究中为6;ρ为样品中的蛋白质量浓度/(mg/mL);13 600为摩尔消光系数/(L/(mol·cm))。
1.3.10 MP羰基含量测定
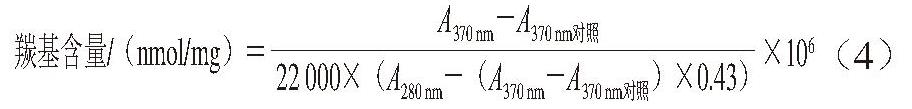
参照Soglia等[22]的方法并稍作修改。取2 份1 mL 2 mg/mL MP溶液于离心管中,1 份加入1 mL 10 mmol/L DNPH溶液(含3 mol/L HCl),另1 份加入1 mL 3 mol/L HCl溶液作为空白对照。混合物避光反应1 h后,加入1 mL 20 g/100 mL三氯乙酸溶液,充分混合15 min,然后4 ℃、8 000×g离心15 min,弃上清液,使用3 mL乙酸乙酯-乙醇溶液(1∶1,V/V)洗涤3 次,以去除未结合的DNPH。将洗涤后的沉淀分散到3 mL 6 mol/L盐酸胍溶液中,于4 ℃条件下孵育24 h,随后分别在370、280 nm波长处测定其吸光度。羰基含量按式(4)计算:
1.4 数据处理
所有实验均重复3 次,结果表示为平均值±标准差。使用SPSS Statistics 26软件对数据进行单因素方差分析,使用Tukey法进行显著性检验,P<0.05为差异具有统计学意义,所有图表均使用Origin 2021软件绘制。
2 结果与分析
2.1 不同阳离子和pH值对MP溶液冷冻前后外观的影响
由图1可知,含不同阳离子的MP溶液经冷冻后,外观存在差异。当pH值为7.0时,冷冻后的Na+组样品无明显变化,K+组上层出现一定的聚集体,随着pH值降低,Na+与Li+组溶液中MP发生不同程度的聚集,Na+组情况相对较好。相同pH值下,K+组冷冻前后的变化更加明显,MP溶液中出现明显的悬浮颗粒,且当pH值为5.0时,溶液明显分层,下层变得透明,这表明含有K+的样品在冷冻期间形成较大的不溶性蛋白质聚集体并悬浮在上层,可能是由于蛋白质变性聚集过程中包裹着一些气泡。
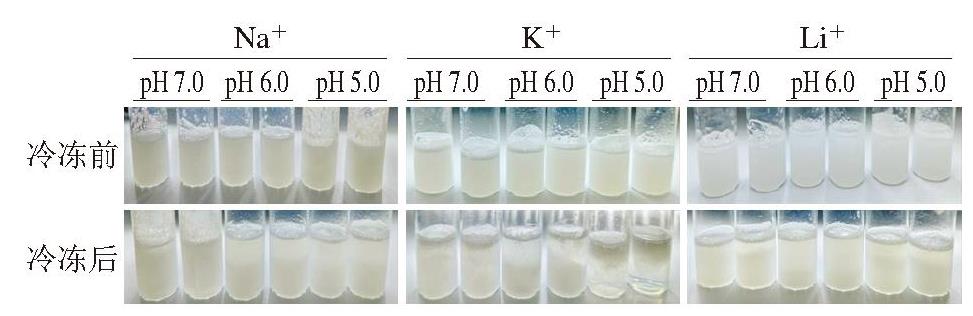
图1 不同阳离子和pH值对MP溶液冷冻前后外观的影响
Fig.1 Effect of different cations and pH on appearance of MP solution before and after freezing
2.2 不同阳离子和pH值对冷冻后MP溶解度的影响
如图2所示,除pH 7.0的Li+组外,冷冻后MP溶解度均出现降低情况,这表明冷冻过程导致可溶性蛋白变性和聚集。当pH值为7.0时,Na+与Li+组的变化不显著,但K+组MP溶解度显著降低(P<0.05),从83.08%降低至43.38%。随着pH值降低,冷冻后K+组MP溶解度的降低幅度始终大于Na+组与Li+组。pH 5.0时,冷冻前K+组的MP溶解度低于Na+组,与Li+组无显著差异,冷冻后K+组MP溶解度最低,为37.99%。由于蛋白质结构的变化,K+组的MP发生了更显著的聚集,从而导致其溶解度显著降低。同时,MP溶解度的下降与表面疏水性的增加密切相关。
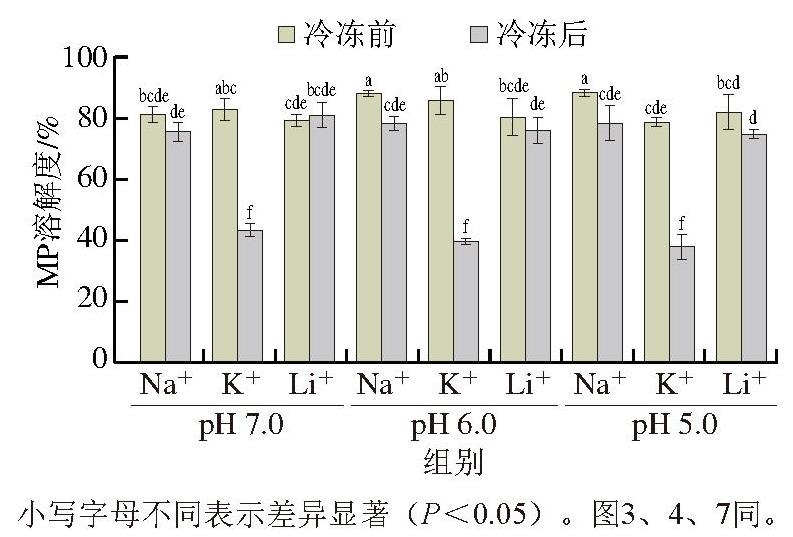
图2 不同阳离子和pH值对冷冻后MP溶解度的影响
Fig.2 Effects of different cations and pH on solubility of MP after freezing
2.3 不同阳离子和pH值对冷冻后MP表面疏水性的影响
通过溴酚蓝与MP的结合量评估蛋白表面疏水性[15],如图3所示,含不同阳离子的MP溶液冷冻后表面疏水性均提高,这可能是由冻藏期间蛋白质的解折叠及疏水性脂肪族和芳香族氨基酸的暴露所引起[23]。相同pH值下,不同阳离子对MP表面疏水性的影响存在差异,当pH 7.0时,冷冻后Na+和K+组MP表面疏水性显著提高(P<0.05),且K+组最高。冷冻后K+组MP表面疏水性随pH值的降低而进一步提高。当pH 5.0时,冷冻后的Na+与Li+组MP表面疏水性均显著增加(P<0.05),但两者间无显著差异。不同阳离子在冷冻过程中诱导蛋白质结构展开的能力不一致,K+能更好地促进MP中的疏水基团暴露,导致蛋白质聚集,Qian Shuyi等[24]指出,疏水基团和巯基的暴露与蛋白质结构的展开促进了蛋白质聚集的分子间交联,从而导致MP溶解度降低。
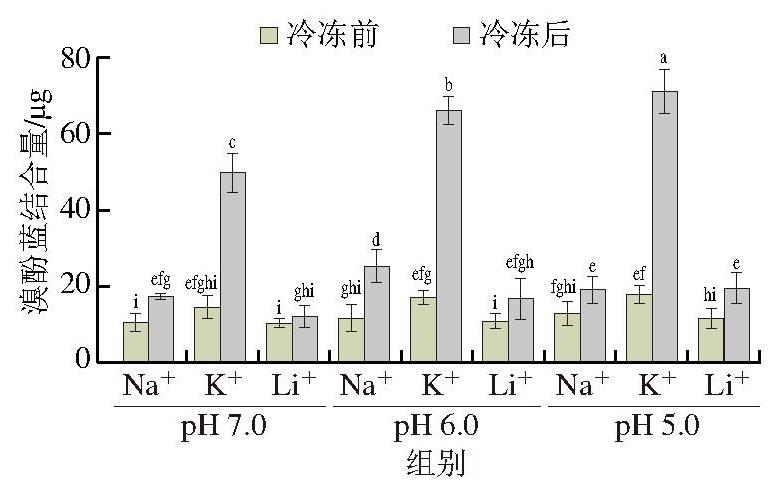
图3 不同阳离子和pH值对冷冻后MP表面疏水性的影响
Fig.3 Effect of different cations and pH on surface hydrophobicity of MP after freezing
2.4 不同阳离子和pH值对冷冻后MP粒径的影响
如图4A所示,未冷冻的MP具有较小的粒径,冷冻后MP分子发生聚集,导致粒径增大。pH 7.0时,冷冻后K+组粒径显著增加(P<0.05,从633.67 nm增加至1 252.31 nm),此时粒径最大。当pH 6.0时,K+组MP粒径进一步增加,其他2 组的粒径与增加幅度均低于K+组。pH值进一步降低时(pH 5.0),Na+与Li+组的MP粒径变化较小,此时K+组MP粒径最大,为1 804.20 nm。MP粒径随着pH值降低有一定增加,可能是受到蛋白质之间的静电相互作用影响,蛋白质的粒径受其静电效应控制[25]。K+组冷冻后粒径较大,与Na+和Li+组具有明显差异,说明K+可能进一步促进蛋白质聚集和变性。
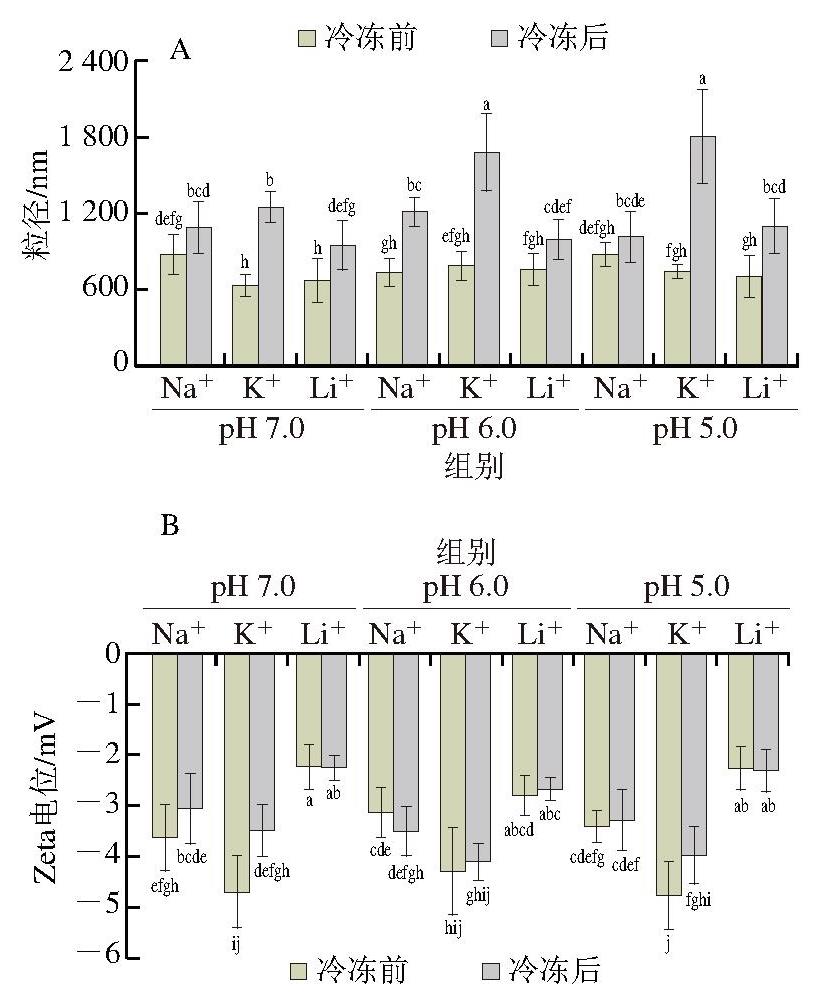
图4 不同阳离子和pH值对冷冻后MP粒径(A)与Zeta电位(B)的影响
Fig.4 Effect of different cations and pH on particle size (A) and zeta potential (B) of MP after freezing
2.5 不同阳离子和pH值对冷冻后MP Zeta电位的影响
Zeta电位与悬浮颗粒表面或近表面的电荷有关。颗粒的有效表面电荷是决定其扩散和聚集的重要因素[26]。 如图4B所示,冷冻前,含不同阳离子的MP溶液Zeta电位不同。K+组冷冻后的Zeta电位绝对值明显降低,pH值为7.0和5.0时,其Zeta电位从-4.68、-4.74 mV增加 至-3.68、-3.95 mV。此时Na+组Zeta电位也分别提高0.57、0.12 mV,Li+无明显变化。同时,pH值变化对于含相同阳离子样品冷冻前后MP Zeta电位的影响较小。在不同阳离子存在的情况下,K+对冷冻后MP的Zeta电位影响更大,3 种一价阳离子中,K+具有更强的盐析 效应[27],MP发生盐析时,电荷减少。溶解度通常与其Zeta电位绝对值相关,Cheung等[28]提到,当MP分子之间发生聚集时,暴露在表面的游离氨基酸含量降低,掩盖其表面静电荷,这也可能是Zeta电位降低的原因。因此,K+可能会进一步导致MP结构变化,促进聚集。
2.6 不同阳离子和pH值对冷冻后MP高级结构的影响
2.6.1 不同阳离子和pH值对冷冻后MP傅里叶变换红外光谱的影响
傅里叶变换红外光谱可用于反映蛋白质构象的变化,对于蛋白质结构分析至关重要。如图5所示,不同波段的峰值对应不同键的拉伸振动,样品在3 200~3 600(酰胺A带,肽键的—OH或—NH拉伸振动)、2 800~3 100(酰胺B带,肽键的—CH对称和不对称振动)、1 600~1 700(酰胺I带,肽键的C=O拉伸振动)、1 500~1 600 cm-1(酰胺II带, C—N、C—C拉伸振动和氨基的N—H弯曲振动)处表现出典型的吸收峰[29]。冷冻后,这些吸收带的形状和峰位置均发生变化。pH 6.0时,K+组在1 660 cm-1处的吸收峰出现轻微红移,Lin Junxin等[30]在研究中提到,吸收峰的红移表明氢键略有变化。同时,酰胺I带峰形和强度的变化也表明MP构象受到影响[31]。
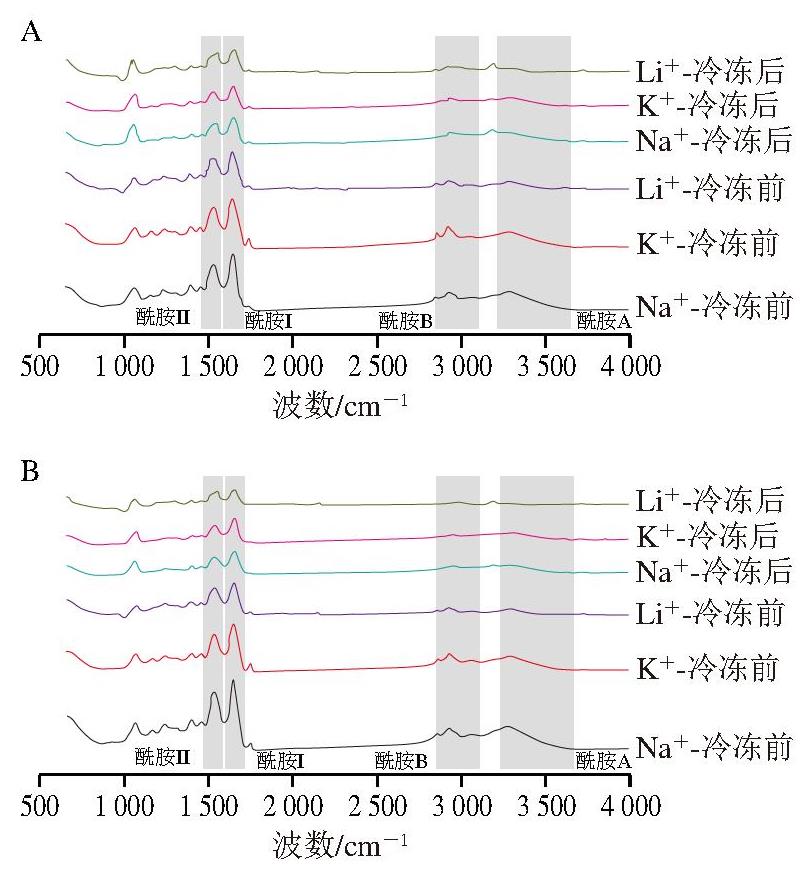
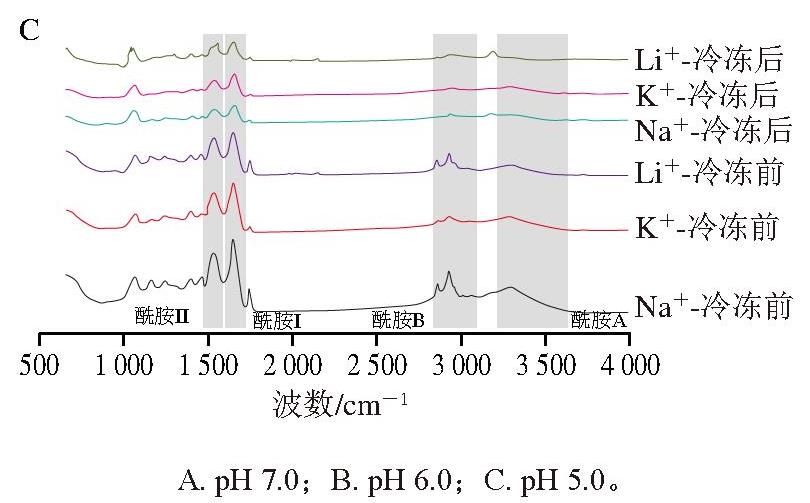
图5 不同阳离子和pH值对冷冻后MP傅里叶变换红外光谱的影响
Fig.5 Effect of different cations and pH on Fourier transform infrared spectrum of MP after freezing
2.6.2 不同阳离子和pH值对冷冻后MP二级结构相对含量的影响
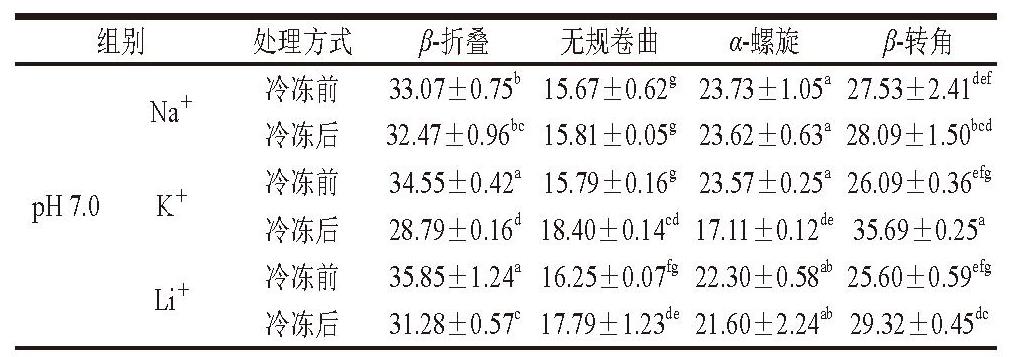
酰胺I带(1 600~1 700 cm-1)由于存在参与氢键的C=O等,对蛋白质二级结构的变化极为敏感,可用于获得蛋白质二级结构相对含量。酰胺I带中,1 650~1 660 cm-1对应α-螺旋,1 600~1 640 cm-1对应β-折叠,1 660~1 690 cm-1对应β-转角,1 640~1 650 cm-1对应无规卷曲[32]。如表1所示,冷冻处理后样品的α-螺旋相对含量均降低。pH 7.0时,冷冻后K+组的α-螺旋相对含量从23.57%显著降低至17.11%(P<0.05),此时β-转角和无规卷曲的相对含量增加。随着pH值的降低,变化幅度进一步增大,当pH值为5.0时,冷冻后K+组的α-螺旋相对含量最低,为16.65%,β-转角和无规卷曲总相对含量增长至58.73%,其余2 组也表现相同的趋势。冷冻后所有样品的α-螺旋相对含量均降低,可能是由于蛋白质的去折叠、疏水基团的暴露和氢键的减弱,这导致有序的α-螺旋断裂为β-转角和β-折叠,使蛋白质构象解离并趋于展开[33],而β-转角和无规卷曲的相对含量增加。在冷冻过程中,随着pH值的降低,含相同阳离子样品的α-螺旋相对含量降低,说明pH值的波动使维持α-螺旋结构稳定性的氢键逐渐被破坏,MP的α-螺旋结构被解旋,使肌球蛋白尾部的α-螺旋中存在的大量疏水基团暴露出来[34]。总的来说,无规卷曲和β-转角相对含量的变化与α-螺旋呈相反趋势,表明蛋白质构象从有序向无序转变。
表1 不同阳离子和pH值对冷冻后MP二级结构相对含量的影响
Table1 Effect of different cations and pH on the relative content of secondary structure of MP after freezing %
组别处理方式β-折叠无规卷曲α-螺旋β-转角Na+冷冷冻冻后前3323..4077±±00..9765bbc1155..6871±±00..0625gg2233..7623±±01..0635aa2287..0593±±21..5401bdcedf pH 7.0K+冷冷冻冻后前2348..7595±±00..4126da1185..4709±±00..1146cgd1273..1517±±00..1225dae2365.0.699±±00.3.265eafg Li+冷冷冻冻后前3351..2858±±01..2547ca1176..7295±±01..2037dfge2221..3600±±20..2548aabb2259..6302±±00..5495edfcg
续表1
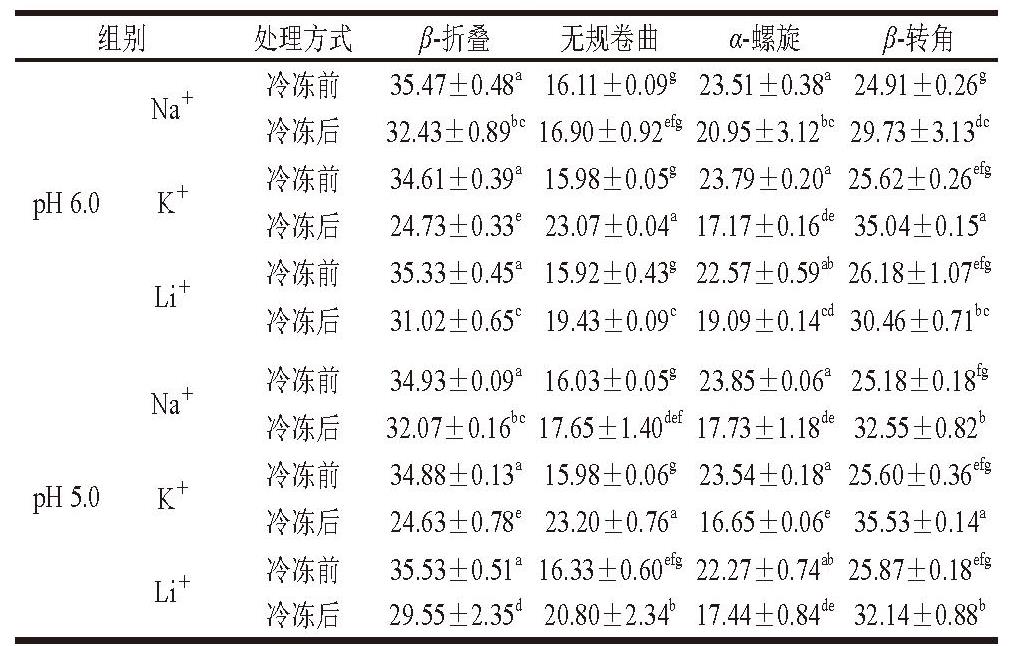
组别处理方式β-折叠无规卷曲α-螺旋β-转角Na+冷冻前35.47±0.48a16.11±0.09g23.51±0.38a24.91±0.26g冷冻后32.43±0.89 bc 16.90±0.92 efg 20.95±3.12 bc 29.73±3.13 dc pH 6.0K+冷冻前34.61±0.39a15.98±0.05g23.79±0.20a25.62±0.26efg冷冻后24.73±0.33e23.07±0.04a17.17±0.16de35.04±0.15a Li+冷冻前35.33±0.45a15.92±0.43g22.57±0.59ab26.18±1.07efg冷冻后31.02±0.65c19.43±0.09c19.09±0.14cd30.46±0.71bc Na+冷冻前34.93±0.09a16.03±0.05g23.85±0.06a25.18±0.18fg冷冻后32.07±0.16bc17.65±1.40def17.73±1.18de32.55±0.82b pH 5.0K+冷冻前34.88±0.13a15.98±0.06g23.54±0.18a25.60±0.36efg冷冻后24.63±0.78e23.20±0.76a16.65±0.06e35.53±0.14a Li+冷冻前35.53±0.51 a 16.33±0.60 efg 22.27±0.74 ab 25.87±0.18 efg冷冻后29.55±2.35d20.80±2.34b17.44±0.84de32.14±0.88b
注:同列小写字母不同表示差异显著(P<0.05)。
2.6.3 不同阳离子和pH值对冷冻后MP紫外吸收光谱和内源荧光光谱的影响
蛋白质的聚集与其构象的变化有关,这种变化可通过紫外吸收光谱测定[35]。蛋白质分子中的酪氨酸(Tyr)和色氨酸(Trp)残基作为显色基团,可在紫外区产生特征吸收光谱。通过250~300 nm紫外吸收光谱检测Tyr和Trp残基微环境变化可反映MP的三级结构[36]。如图6A~C所示,冷冻后,除pH 5.0时Li+组的最大吸收峰略微增加外,其余含不同阳离子MP的最大吸收峰均下降。当pH值降低时,各组的吸收峰进一步降低,其中K+组最低,表明冷冻后K+导致的MP紫外吸收光谱最大吸收峰的降低更加明显,这可能归因于Tyr和Trp的氧化修饰[37]。Wang Ruihong等[38]也提到,在冷冻贮藏期间,蛋白质结构解折叠,使额外的发色团转移到蛋白质表面,从而降低了紫外吸收光谱最大吸收峰,同时疏水腔的形成导致最大吸收峰向长波长移动。
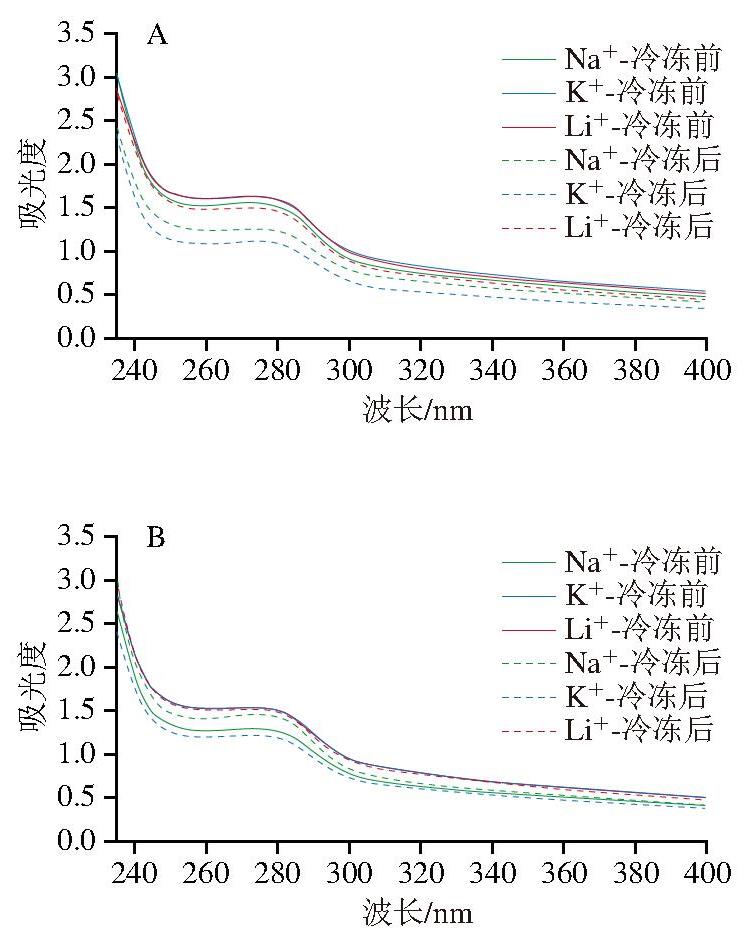
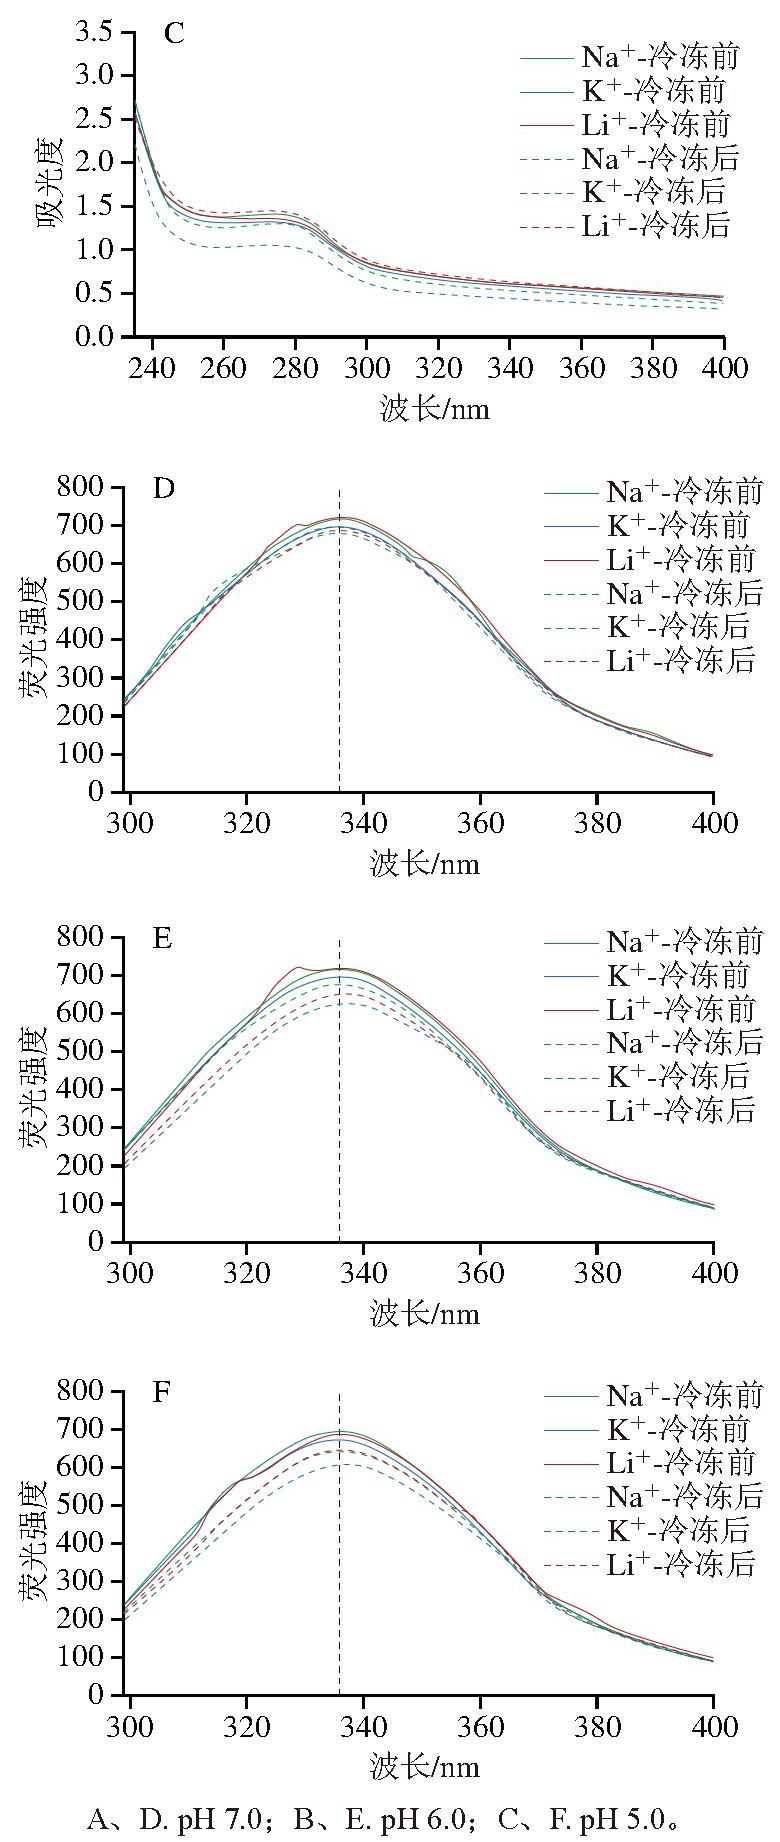
图6 不同阳离子和pH值对冷冻后MP紫外吸收光谱(A~C)和内源荧光光谱(D~F)的影响
Fig.6 Effects of different cations and pH on ultraviolet absorption spectrum (A-C) and intrinsic fluorescence spectrum (D-F) of MP after freezing
利用内源荧光光谱可以观察到MP的最大荧光强度(FImax),这可以反映芳香族氨基酸Trp和Tyr的微环境变化,进而反映蛋白质的三级结构变化[39]。如图6D~F所示,与冷冻前相比,冷冻后样品的最大荧光发射波长均发生红移。当pH 7.0时,冷冻后MP样品的FImax均有所降低,其中K+组较小,FImax为680.20。当pH值降低至6.0,含不同阳离子的样品冷冻后差异扩大,Na+、K+和Li+组的FImax分别降低至676.90、624.80和649.00;pH 5.0时,Na+组FImax较高,K+组最低,为606.60,这表明冷冻处理导致蛋白质去折叠,且埋藏在蛋白质核心中的残基暴露于溶剂(亲水环境)中。但不同阳离子组间存在明显差异,经K+处理的MP荧光强度降低幅度高于其他组。从pH值角度看,pH值的降低与MP FImax的降低呈正相关,冷冻过程中pH值的变化对埋藏Trp的极性微环 境影响很大。
2.7 不同阳离子和pH值对冷冻后MP氧化程度的影响
总巯基含量的下降常被用来指示蛋白氧化的发生。如图7A所示,与Na+和Li+组相比,冷冻后K+组总巯基含量最低(pH 7.0),为40.05 nmol/mg,Na+组总巯基含量最高。随着pH值降低,冷冻后K+组总巯基含量的降低幅度最大,pH 5.0时总巯基含量最低,为39.25 nmol/mg,Li+组总巯基含量也随着pH值降低整体呈下降趋势。总巯基包括蛋白质表面的活性巯基和隐藏在内部的疏基。冷冻后MP构象发生变化,内部巯基暴露。一方面,表面活性巯基易被氧化形成二硫键,导致MP的总巯基含量降低,表面疏水性增加;另一方面,这可能归因于MP的聚集,活性巯基被包裹在蛋白质内部,总巯基含量 减少[40]。因此K+对冷冻后MP氧化的影响更大。
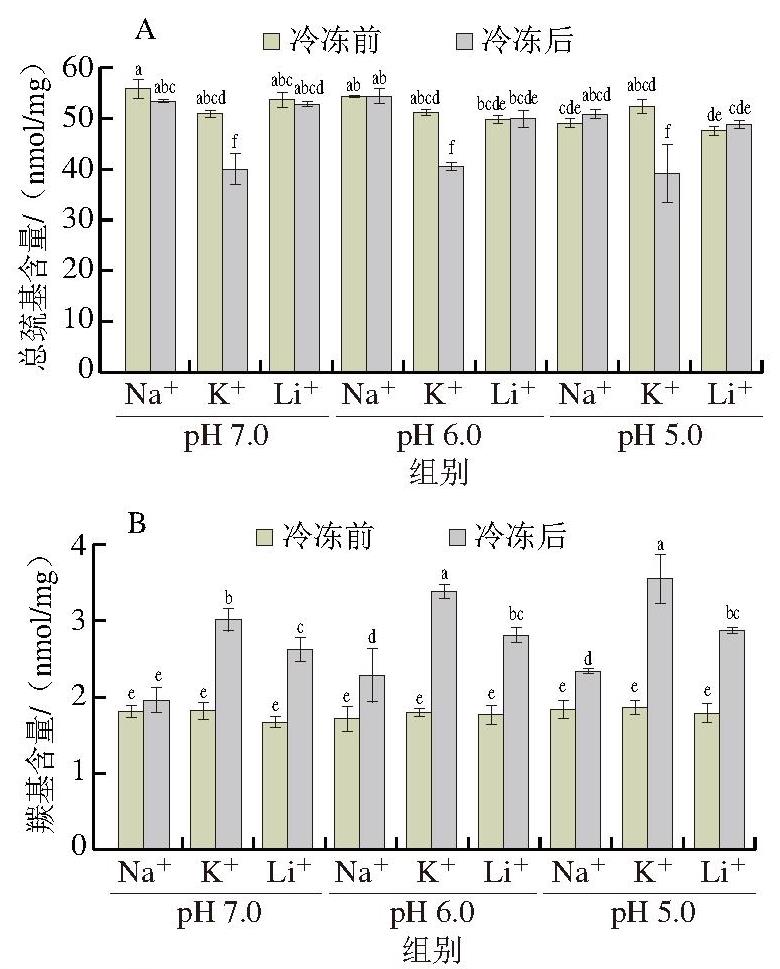
图7 不同阳离子和pH值对冷冻后MP总巯基含量(A)和 羰基含量(B)的影响
Fig.7 Effects of different cations and pH on total sulfhydryl (A) and carbonyl contents (B) of MP after freezing
羰基是另一种蛋白质氧化的标志性产物。在肉类蛋白质中,羰基化合物主要通过脯氨酸、精氨酸和赖氨酸等氨基酸的易感侧链氧化脱氨形成[41]。如图7B所示,冷冻前MP羰基含量较低,冷冻后羰基含量增加,这表明冷冻过程促进了羰基化合物的形成。与冷冻前样品相比,在pH值为7.0时,冷冻后K+与Li+组的羰基含量显著增加(P<0.05),分别从1.80、1.67 nmol/mg增加至3.01、2.62 nmol/mg,K+组羰基含量最高,这种差异反映了冷冻过程中K+组MP氧化修饰更显著。当pH值降低时,各组的羰基含量进一步增加,pH 5.0时,冷冻后K+组羰基含量最高,为3.55 nmol/mg,Li+组次之,为2.88 nmol/mg,Na+组最低,为2.34 nmol/mg,均高于冷冻前样品。
2.8 不同阳离子和pH值对冷冻后MP变性及氧化的影响机制
相同离子强度下,不同的阳离子或阴离子对蛋白溶解性和稳定性的影响有所区别(Hofmeister效应),这与不同离子的离子色散力不同有关[42]。当盐浓度较高时(本研究中为0.6 mol/L),静电屏蔽效应强,Hofmeister效应对蛋白理化性质的影响大。本研究发现,3 种不同的阳离子(Na+、K+、Li+)对MP在冷冻过程中理化性质变化的影响不同,其中K+的存在造成了冷冻后MP更大程度的变性(图3、5、6、表1)和氧化(图7),而MP的变性与氧化造成了其溶解度下降(图2),聚集后沉淀或上浮(图1)。类似地,Kelleher等[4]发现,相较于LiCl,用KCl提取的鱼肉MP表面疏水性较高,ATP酶活性较低,表明MP具有较高的变性程度。同时,KCl提取液中形成的气泡也更多。结合本研究结果,推测上述现象与Li+、K+性质不同有关:Li+表面电荷密度高,使其周围水分子排布类似于冰;当Li+与蛋白结合时,整个溶液系统处于低熵状态,如果蛋白变性,其水合半径增大会结合更多的Li+,进一步降低系统的熵,这在热力学上是不利的。Salis等[27]指出,蛋白质中带负电荷的基团如天冬氨酸、谷氨酸残基倾向与高度水合的阳离子结合,而Li+的水合程度高于K+。因此,Li+倾向于稳定蛋白质,而K+则相反,其表面电荷密度低,对蛋白质稳定性贡献较弱。本研究结果中,冷冻引发的蛋白失稳现象在K+存在时最显著。
Wu Lijun等[5]在探究NaCl对MP盐溶效应的影响时发现,MP的溶解度随NaCl浓度的变化受到pH值的调控:pH值处于MP等电点(约pH 5.0)时,溶解度随盐浓度的提高而升高;pH值低于等电点时,溶解度随盐浓度的提高而下降;pH值高于等电点时,溶解度随盐浓度的提高先下降后上升。Bertram等[6]发现,不同pH值及离子强度显著影响了MP的氧化和持水性能,孙栋等[43]也在研究中提到,不同pH值会对MP产生影响。本研究中,不同pH值对MP冷冻后的理化性质也有一定影响。K+导致的冷冻后MP无规卷曲相对含量增加(表1)、表面疏水性升高(图3)、粒径增大(图4)、羰基含量上升(图7)等随着pH值降低而进一步加剧,可能是因为pH值下降导致MP净负电荷减少,从而使MP与阳离子结合减少,导致其稳定性降低。
3 结 论
本研究探究了不同阳离子(Na+、K+、Li+)与pH值(5.0、6.0、7.0)对冷冻后MP稳定性的影响,结果表明,冷冻后MP稳定性降低,阳离子种类和pH值显著调控MP冷冻变性程度。相同pH值下,K+组冷冻后的蛋白质聚集现象最为明显。pH 7.0时,K+组进一步导致MP溶解度的降低和疏水基团暴露,并伴有MP分子的聚集和尺寸增加、Zeta电位绝对值降低。相较于其他阳离子,K+促进了MP的氧化及结构的破坏。随着pH值的降低,冷冻对MP的损伤加剧,这种效应在K+存在时尤为突出,因此 K+与较低pH值通过促进蛋白质解折叠、氧化聚集和结构破坏显著降低MP冷冻稳定性。相比之下,Na+与Li+组间差异较小,在相同条件下对MP的冷冻变性具有较好的抑制作用,能够在一定程度上维持蛋白质的溶解度和结构稳定性。
[1] Offer G, Trinick J. On the mechanism of water holding in meat: the swelling and shrinking of myofibrils[J]. Meat Science, 1983, 8(4): 245-281. DOI:10.1016/0309-1740(83)90013-X.
[2] Ertbjerg P, Puolanne E. Muscle structure, sarcomere length and influences on meat quality: a review[J]. Meat Science, 2017, 132: 139-152. DOI:10.1016/j.meatsci.2017.04.261.
[3] Munasinghe D M S, Sakai T. Sodium chloride (0.8 M) as a better protein extractant for fish meat quality assessments[J]. Journal of Food Science, 2003, 68(3): 1059-1062. DOI:10.1111/j.1365-2621.2003.tb08287.x.
[4] Kelleher S D, Hultin H O. Lithium chloride as a preferred extractant of fish muscle proteins[J]. Journal of Food Science, 1991, 56(2): 315-317. DOI:10.1111/j.1365-2621.1991.tb05269.x.
[5] Wu Lijun, Wu Tao, Wu Juqing, et al. Effects of cations on the s“alt in” of myofibrillar proteins[J]. Food Hydrocolloids, 2016, 58: 179-183.DOI:10.1016/j.foodhyd.2016.02.028.
[6] Bertram H C, Kristensen M, Østdal H, et al. Does oxidation affect the water functionality of myofibrillar proteins?[J]. Journal of Agricultural and Food Chemistry, 2007, 55(6): 2342-2348. DOI:10.1021/jf0625353.
[7] 郭园园, 孔保华. 冷冻贮藏引起的鱼肉蛋白质变性及物理化学特性的变化[J]. 食品科学, 2011, 32(7): 335-340.
[8] Chen Y H, Cui Z. Effect of salts on the freezing denaturation of lactate dehydrogenase[J]. Food and Bioproducts Processing, 2006, 84(1): 44-50. DOI:10.1205/fbp.05132.
[9] Tan Mingtang, Ye Jingxin, Xie Jing. Freezing-induced myofibrillar protein denaturation: role of pH change and freezing rate[J]. LWT-Food Science and Technology, 2021, 152: 112381. DOI:10.1016/j.lwt.2021.112381.
[10] Fang Bowen, Isobe K, Handa A, et al. Microstructure change in whole egg protein aggregates upon freezing: effects of freezing time and sucrose addition[J]. Journal of Food Engineering, 2021, 296: 110452.DOI:10.1016/j.jfoodeng.2020.110452.
[11] Bao Yulong, Ertbjerg P, Estévez M, et al. Freezing of meat and aquatic food: underlying mechanisms and implications on protein oxidation[J].Comprehensive Reviews in Food Science and Food Safety, 2021,20(6): 5548-5569. DOI:10.1111/1541-4337.12841.
[12] Zhang Yuemei, Puolanne E, Ertbjerg P. Mimicking myofibrillar protein denaturation in frozen-thawed meat: effect of pH at high ionic strength[J]. Food Chemistry, 2021, 338: 128017. DOI:10.1016/j.foodchem.2020.128017.
[13] Wang Haifeng, Wang Pingya, Shen Qing, et al. Insight into the effect of ultrasound treatment on the rheological properties of myofibrillar proteins based on the changes in their tertiary structure[J].Food Research International, 2022, 157: 111136. DOI:10.1016/j.foodres.2022.111136.
[14] Yongsawatdigul J, Sinsuwan S. Aggregation and conformational changes of tilapia actomyosin as affected by calcium ion during setting[J]. Food Hydrocolloids, 2007, 21(3): 359-367. DOI:10.1016/j.foodhyd.2006.04.006.
[15] Chelh I, Gatellier P, Santé-Lhoutellier V. Technical note: a simplified procedure for myofibril hydrophobicity determination[J]. Meat Science, 2006, 74(4): 681-683. DOI:10.1016/j.meatsci.2006.05.019.
[16] Feng Jin, Xu Lujing, Wang Hua, et al. Interaction between Gemini dodecyl O-glucosides-based multilayer vesicles and β-lactoglobulin:the dominant role of surface charge[J]. Journal of Agricultural and Food Chemistry, 2019, 67(3): 844-855. DOI:10.1021/acs.jafc.8b03180.
[17] Yang Bing, Yang Li, Xu Ruihong, et al. Effects of static magnetic field (SMF) and alternating magnetic field (AMF) assisted freezing on the microstructure and protein properties of channel catfish (Ictalurus punctatus) fillet[J]. Food Chemistry, 2024, 434: 137509. DOI:10.1016/j.foodchem.2023.137509.
[18] Yin Tao, Yao Rao, Ullah I, et al. Effects of nanosized okara dietary fiber on gelation properties of silver carp surimi[J]. LWT-Food Science and Technology, 2019, 111: 111-116. DOI:10.1016/j.lwt.2019.05.023.
[19] Cong Haihua, Lü He, Liang Wenwen, et al. Changes in myosin from silver carp (Hypophthalmichthys molitrix) under microwave-assisted water bath heating on a multiscale[J]. Foods, 2022, 11(8): 1071.DOI:10.3390/foods11081071.
[20] Jiang Wenxin, He Yufan, Xiong Shanbai, et al. Effect of mild ozone oxidation on structural changes of silver carp (Hypophthalmichthys molitrix) myosin[J]. Food and Bioprocess Technology, 2017, 10(2):370-378. DOI:10.1007/s11947-016-1828-5.
[21] 虎瑶, 张赫宇, 杨东松, 等. 肌原纤维蛋白氧化介导的滩羊肉保水性的变化[J]. 中国食品学报, 2025, 25(4): 185-195. DOI:10.16429/j.1009-7848.2025.04.017.
[22] Soglia F, Petracci M, Ertbjerg P. Novel DNPH-based method for determination of protein carbonylation in muscle and meat[J]. Food Chemistry, 2016, 197: 670-675. DOI:10.1016/j.foodchem.2015.11.038.
[23] 劳梦甜, 曾璐瑶, 吴孟钊, 等. 冻结方式对黑斑蛙后腿肌肉持水性及肌原纤维蛋白结构特性的影响[J]. 食品科学, 2024, 45(13): 264-274.DOI:10.7506/spkx1002-6630-20231025-218.
[24] Qian Shuyi, Hu Feifei, Li Xia, et al. On the emerging of thawing drip:role of myofibrillar protein renaturation[J]. Food Chemistry, 2022,393: 133398. DOI:10.1016/j.foodchem.2022.133398.
[25] Chin A F, Toptygin D, Elam W A, et al. Phosphorylation increases persistence length and end-to-end distance of a segment of tau protein[J]. Biophysical Journal, 2016, 110(2): 362-371. DOI:10.1016/j.bpj.2015.12.013
[26] Wei Ran, Wan Zicong, Xu Xiaoyan, et al. Malondialdehyde and peroxyl radical-driven oxidation of myofibrillar proteins to improve the gelation and emulsification properties[J]. Food Structure, 2025, 43:100410. DOI:10.1016/j.foostr.2025.100410.
[27] Salis A, Ninham B W. Models and mechanisms of Hofmeister effects in electrolyte solutions, and colloid and protein systems revisited[J].Chemical Society Reviews, 2014, 43(21): 7358-7377.
[28] Cheung L, Wanasundara J, Nickerson M T. The effect of pH and NaCl levels on the physicochemical and emulsifying properties of a cruciferin protein isolate[J]. Food Biophysics, 2014, 9(2): 105-113.DOI:10.1007/s11483-013-9323-2.
[29] Feng Jin, Cai He, Wang Hua, et al. Improved oxidative stability of fish oil emulsion by grafted ovalbumin-catechin conjugates[J]. Food Chemistry, 2018, 241: 60-69. DOI:10.1016/j.foodchem.2017.08.055.
[30] Lin Junxin, Sun Peizi, Zhao Yanfen, et al. Effect of L-lysine on heatinduced aggregation behavior of Antarctic krill (Euphausia superba) myofibrillar protein[J]. Food and Bioprocess Technology, 2024, 17(6): 1448-1461. DOI:10.1007/s11947-023-03205-y.
[31] Xu Yujuan, Han Minyi, Huang Mingyuan, et al. Enhanced heat stability and antioxidant activity of myofibrillar protein-dextran conjugate by the covalent adduction of polyphenols[J]. Food Chemistry, 2021, 352:129376. DOI:10.1016/j.foodchem.2021.129376.
[32] Martinez I, Sánchez-Alonso I, Piñeiro C, et al. Protein signatures to trace seafood contamination and processing[J]. Foods, 2020, 9(12):1751. DOI:10.3390/foods9121751.
[33] Li Jiao, Dai Zechuan, Chen Zhaohui, et al. Improved gelling and emulsifying properties of myofibrillar protein from frozen shrimp (Litopenaeus vannamei) by high-intensity ultrasound[J]. Food Hydrocolloids, 2023, 135: 108188. DOI:10.1016/j.foodhyd.2022.108188.
[34] Higuera-Barraza O A, Torres-Arreola W, Ezquerra-Brauer J M, et al.Effect of pulsed ultrasound on the physicochemical characteristics and emulsifying properties of squid (Dosidicus gigas) mantle proteins[J].Ultrasonics Sonochemistry, 2017, 38: 829-834. DOI:10.1016/j.ultsonch.2017.01.008.
[35] Panpipat W, Chaijan M. Effect of atmospheric pressure cold plasma on biophysical properties and aggregation of natural actomyosin from threadfin bream (Nemipterus bleekeri)[J]. Food and Bioprocess Technology, 2020, 13(5): 851-859. DOI:10.1007/s11947-020-02441-w.
[36] Zheng Yao, Zhou Fen, Zhang Long, et al. Effect of different extent of protein oxidation on the frozen storage stability of muscle protein in obscure pufferfish (Takifugu obscurus)[J]. LWT-Food Science and Technology, 2021, 137: 110416. DOI:10.1016/j.lwt.2020.110416.
[37] Lü Liangtao, Lin Hong, Li Zhenxing, et al. Changes of structure and IgE binding capacity of shrimp (Metapenaeus ensis) tropomyosin followed by acrolein treatment[J]. Food & Function, 2017, 8(3): 1028-1036. DOI:10.1039/c6fo01479h.
[38] Wang Ruihong, Ma Yanqiu, Zhang Longyuan, et al. Changes in egg yolk gelation behaviour and mechanisms during freezing[J]. LWT-Food Science and Technology, 2021, 151: 112223. DOI:10.1016/j.lwt.2021.112223.
[39] Yu Yali, Guan Yu, Liu Jingbo, et al. Molecular structural modification of egg white protein by pH-shifting for improving emulsifying capacity and stability[J]. Food Hydrocolloids, 2021, 121: 107071.DOI:10.1016/j.foodhyd.2021.107071.
[40] Xie Kun, Yang Feng, Ren Xian’e, et al. Insight into the effects of hydrodynamic cavitation at different ionic strengths on physicochemical and gel properties of myofibrillar protein from tilapia (Oreochromis niloticus)[J]. Foods, 2024, 13(6): 851. DOI:10.3390/foods13060851.
[41] Estévez M. Protein carbonyls in meat systems: a review[J]. Meat Science, 2011, 89(3): 259-279. DOI:10.1016/j.meatsci.2011.04.025.
[42] Boström M, Williams D R M, Ninham B W. Why the properties of proteins in salt solutions follow a Hofmeister series[J]. Current Opinion in Colloid & Interface Science, 2004, 9(1/2): 48-52.DOI:10.1016/j.cocis.2004.05.001.
[43] 孙栋, 胡婷, 冯耀文, 等. 不同pH值下蛋白氧化和NaCl浓度对牦牛肉肌原纤维蛋白结构的影响[J]. 肉类研究, 2025, 39(6): 1-8.DOI:10.7506/rlyj1001-8123-20241028-284.